
A ORIGEM DA VIDA
Acredita-se que o nosso universo tenha surgido há ~13,7 bilhões de anos
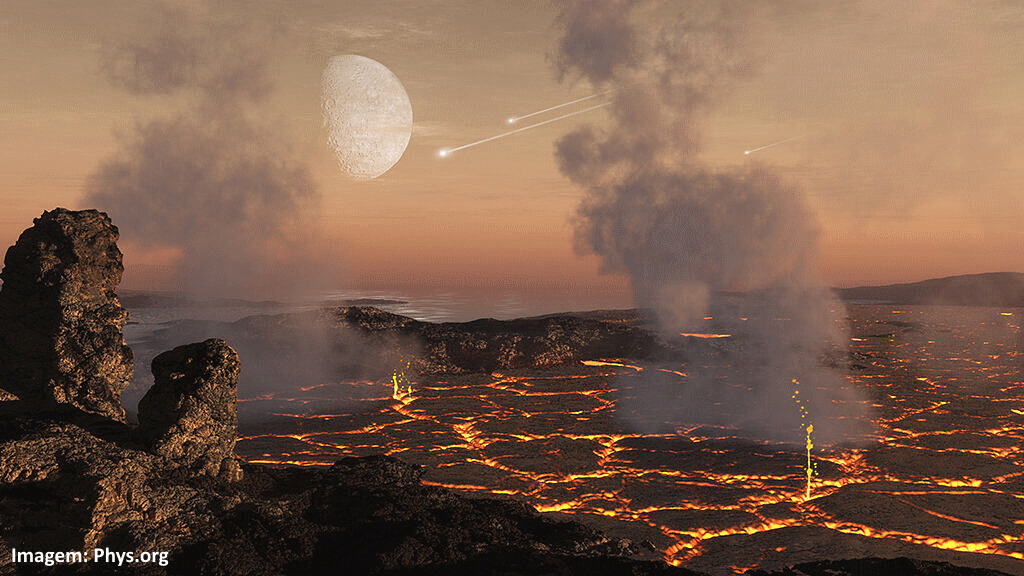
e o planeta Terra há ~4,5 bilhões de anos. No início de sua formação a Terra
era em grande parte coberta por magma, havia intensas descargas elétricas,
atividade vulcânica e bombardeios por meteoritos. As condições eram bem
diferentes das atuais e nesse ambiente inóspito não havia vida.
Porém, na medida em que o planeta começou a resfriar e surgiram as primeiras rochas sólidas, foram surgindo as condições capazes de permitir o
surgimento dos primeiros organismos. Acredita-se que os primeiros microfósseis
datem de ~3,5 bilhões de anos atrás.

Aspecto da Terra primitiva.
Há duas correntes principais de pensamento para explicar o surgimento
dos organismos, desenvolvidas muitos anos antes de os pesquisadores terem
noções sobre o surgimento e as condições da Terra primitiva. São elas:
Biogênese: acredita-se que um organismo poderia surgir apenas a partir
de outro, pré-existente.
Abiogênese: acredita-se que a matéria não viva possa se organizar de maneira a gerar os organismos vivos.
No âmbito da abiogênese, há conceito antigo e um
moderno:
- Abiogênese por meio da ação de uma “força vital” ou algo similar, capaz
de reorganizar a matéria não viva e gerar seres vivos rapidamente, como em
poucos dias. É uma ideia antiga, com raízes aristotélicas e também pode ser
chamada de geração espontânea. Lembrando que as pessoas sabiam que a reprodução
originava novos seres vivos, porém, eles também criam que a vida poderia surgir
via geração espontânea.
- Abiogênese por meio de processos de “evolução química”’, de longa duração, nos quais houve a formação das substâncias constituintes das células, sua organização e a geração das primeiras células. É o conceito moderno e o mais aceito pelos pesquisadores.

Apesar de esse segundo ser o conceito mais aceito hoje em dia, por
muito tempo, a maioria dos estudiosos cria na hipótese da geração espontânea,
que enfrentou um dos seus primeiros desafios experimentais em 1668. Foi quando
Francesco Redi elaborou um experimento tentando desbancá-la baseado na hipótese
de que as larvas que se observam nos corpos em putrefação são originadas pelos
ovos que as moscas depositam neles, não o resultado de geração espontânea.
Para testar essa hipótese Redi elaborou um experimento que, simplificando,
consistia em colocar pedaços de carne em dois conjuntos de frascos: um conjunto
era mantido destampado, de maneira que as moscas poderiam pousar nas carnes,
enquanto o outro era mantido tampado, isolando as carnes das moscas. Após
deixar os frascos em repouso por alguns dias, observou que só surgiram larvas
nos frascos deixados destampados, onde as moscas poderiam pousar, logo, sua
hipótese foi confirmada: as larvas eclodem dos ovos das moscas e não surgem por
geração espontânea.

Esquema simplificado do experimento de Redi.
Não obstante, os resultados foram contestados por muito tempo: os
críticos afirmaram que ao tampar os frascos Redi tinha impedido a força vital
de entrar em contato com as carnes, por isso as larvas não surgiram. Ademais, os
defensores da geração espontânea criam que a força vital ainda podia gerar
micro-organismos. Os micro-organismos foram descritos pela primeira vez em
1665, por Robert Hooke.
Após anos de controvérsia, incluindo outros experimentos, a disputa foi
resolvida de vez em 1862 por Louis Pasteur. Pasteur realizou um experimento
para testar a hipótese de que, ao se ferver um caldo nutritivo, os
micro-organismos que se detectam no material posteriormente são provenientes de
contaminação pelo ar, ao invés de surgirem por geração espontânea.
Para isso, Pasteur criou frascos com gargalos longos e curvados,
chamados de pescoço de cisne. Dentro desses frascos foi introduzido o caldo
nutritivo, que foi esterilizado com o uso de uma chama. Então os gargalos também foram curvados também com o auxílio de uma chama. Esses gargalos curvados permitem que a
suposta força vital entre no frasco e tenha contato com o caldo nutritivo,
porém, retêm os micro-organismos contaminantes na curvatura.

Frasco com o gargalo curvado usado no experimento de Pasteur.
Dias após realizar o experimento não se encontrou vida nos frascos, mas
quando se arrancavam os gargalos de modo a permitir o contato do ar e dos
micro-organismos contaminantes com o caldo, em pouco tempo as amostras foram
contaminadas por eles.
Esse experimento terminou a controvérsia sobre a geração espontânea e a
biogênese de maneira definitiva. Porém, um problema ainda persistia e persiste:
e quanto ao primeiro organismo? Esse não poderia ter sido gerado a partir de
outro. Logo, deveria haver algum tipo de processo abiótico, sem um componente
similar a força vital, capaz de tê-lo gerado. Como mencionado, a maioria dos
pesquisadores aceita a hipótese de que a vida surgiu via abiogênese por
processos de evolução química.
Acredita-se que na Terra primitiva ocorreram processos químicos nos
quais as substâncias simples, ao longo do tempo e nas condições adequadas, geraram
substâncias orgânicas cada vez mais complexas, que, por fim, originaram os
primeiros organismos.

Resumo simplificado de como a vida pode ter surgido.
Uma possibilidade é baseada nas propostas de Haldane e Oparin, de 1924
(ambos trabalhando independentemente): supondo uma atmosfera pobre em oxigênio
e composta primariamente por CH4, H2, NH3 e H2O,
essas substâncias reagiriam graças à energia fornecida por descargas elétricas originando
compostos orgânicos, que seriam concentrados nos oceanos e deram origem à uma
“sopa pré-biótica”, onde os processos de evolução química foram capazes de
permitir o surgimento da vida.
Essa hipótese foi testada em 1953 por Stanley Miller, que elaborou um
aparato simulando essas condições ambientais. No aparato a água que evapora faz
circular os compostos e os eletrodos simulam os relâmpagos, que
fornecem a energia requerida para as reações químicas. Após algum tempo, foram
detectadas algumas substâncias orgânicas como os aminoácidos glicina e alanina.

Modelo do aparelho de Miller.
Atualmente acredita-se que essas não tenham sido as condições da
atmosfera primitiva, porém, o experimento mostra a possibilidade de se obter
substâncias orgânicas a partir de substâncias inorgânicas simples, dependendo
das condições ambientais. Além disso, também é possível que micro-organismos ou
várias substâncias tenham sido formados fora da Terra e trazidos para cá em
corpos celestes como os meteoritos. Essa é a hipótese chamada de panspermia,
evidenciada pela presença de vestígios de micro-organismos e de substâncias
orgânicas em alguns meteoritos, que podem ter origem extraterrestre.

A hipótese da panspermia prevê que algumas substâncias e talvez até micro-organismos possam ter sido trazidos para a Terra em corpos celestes.
O próximo passo deve ter sido a formação de moléculas orgânicas mais
complexas, como os fosfolipídeos, proteínas e os ácidos nucleicos. Mas para que
haja a síntese dessas moléculas e a vida possa surgir é necessário que haja
catálise e polímeros capazes de armazenar as informações genéticas. Como as
moléculas de RNA são capazes de fazer ambas as coisas, pode ser que elas tenham
surgido antes das outras moléculas complexas: é a hipótese chamada de mundo do RNA.

Como as moléculas de RNA podem tanto transmitir informações genéticas quanto ter atividade catalítica, podem ter sido as precursoras tanto do DNA quanto das proteínas.
Os fosfolipídeos permitiram a formação das bicamadas fosfolipídicas,
estrutura básica das membranas celulares. Essas bicamadas podem ter permitido a
compartimentação e a concentração das substâncias orgânicas, das moléculas de
RNA inclusive, favorecendo a ocorrência das reações químicas capazes de gerar
as primeiras células.
Tendo surgido, enfim, as primeiras células, acredita-se que elas tenham
sido bem simples, similares às células procariontes mais simples atuais.
Lembre-se de que a Terra tem ~4,5 bilhões de anos e os primeiros possíveis
microfósseis de células, ~3,5 bilhões.

Candidatus Pelagibacter communis. São as células de vida livre com o menor genoma conhecido, de 1.308.759 pares de bases e aproximadamente 1389 genes.
No tocante ao tipo de metabolismo energético dos primeiros organismos,
há duas hipóteses, a de que eles eram heterótrofos e a de que eram autótrofos.
- Hipótese heterotrófica: supõe que as primeiras células devem ter sido
as mais simples possíveis nas condições em que se encontravam, logo, como os
sistemas bioquímicos requeridos para a síntese de substâncias orgânicas a
partir das inorgânicas requer um nível maior de complexidade, a hipótese prevê
que os primeiros organismos obtinham os seus nutrientes a partir do meio. Esses
primeiros organismos se desenvolveram em um meio anaeróbico e podem ter
realizado um processo similar à fermentação alcoólica como a conhecemos
atualmente, que, além de gerar energia potencial química, libera etanol e CO2
para o meio, sendo que esse CO2 pode ter favorecido o surgimento dos
autótrofos, que o utilizam como fonte de átomos de carbono para a síntese de
substâncias orgânicas.
A sequência de surgimento dos organismos no planeta seria:
Fermentadores (liberam CO2) => Fotossíntéticos (liberam O2) => Aeróbicos.
(Detalhe, nem todos os tipos de fermentação liberam CO2 para
o meio. A alcoólica, por exemplo, libera, já a lática, não).
- Hipótese autotrófica: supõe que as primeiras células devem ter sido
autótrofas quimiossintetizantes, pois, apesar da complexidade, não haveria
processos químicos capazes de gerar substâncias orgânicas em quantidades
suficientes para manter os organismos heterótrofos na Terra primitiva. Assim,
os primeiros seres vivos podem ter sido quimiossintetizantes, como os
encontrados nas fontes hidrotermais nas profundezas dos oceanos, que são
ambientes quentes (60°-105° C) e sulfurosos.
Esses ambientes seriam protegidos da instabilidade da superfície do
planeta e poderiam permitir que houvesse a seguinte reação:
FeS + H2S => FeS2 + H2 + energia potencial química.
A energia potencial química é então empregada para impulsionar a
síntese de substâncias orgânicas que sevem de alimento ao quimiotrófico.
Então, de acordo com essa hipótese, a sequência de surgimento dos
organismos no planeta é:
Quimiossintéticos => Fermentadores (liberam CO2) => Fotossintéticos (liberam O2) => Respiração aeróbica.

Resumo de um ecossistema encontrado nas vizinhanças das fontes hidrotermais.
Posteriormente, além das células procariontes, houve também o
desenvolvimento das células eucariontes, que são mais complexas e possuem
sistemas membranosos internos: as várias organelas membranosas, como o retículo
endoplasmático, complexo de golgi, peroxissomo e etc. Essas células podem ter
surgido há 2,5 bilhões de anos e os sistemas membranosos internos podem ter
sido o resultado de invaginações da membrana plasmática, a sim de corresponder
ao aumento no volume: as células eucariontes são, normalmente, bem maiores que
as procariontes e, enquanto a área de superfície corresponde ao quadrado da
dimensão linear, o volume corresponde ao cubo. Então, para corresponder a
superfície, surgiram as invaginações, que por sua vez geraram as estruturas
membranosas internas.
Além disso, pode também ter havido o aumento de complexidade graças ao
processo de endossiombiose ou simbiogênese, no qual as células eucariontes
primitivas fagocitaram células procariontes, mas ao invés de digeri-las,
mantiveram-nas em seu interior pois isso lhes conferia vantagens adaptativas.
Bons exemplos de organelas que podem ter surgido assim são as mitocôndrias e os
cloroplastos, que possuem duas membranas, DNA e ribossomos próprios além de
poderem se duplicar.

Esquema mostrando como poderiam ter surgido e se desenvolvido as células eucariontes.
E assim, uma vez que a vida surgiu, pôde evoluir e gerar a enorme
biodiversidade que conhecemos. Para terminar, no tocante à questão “o que é
vida?” a NASA define da seguinte forma: a vida como a conhecemos, aqui na
Terra, é um sistema químico autossustentável capaz de evoluir por mecanismos
darwinianos.
https://pubmed.ncbi.nlm.nih.gov/15209075
https://www.forbes.com/sites/jamiecartereurope/2020/08/26/what-is-panspermia-new-evidence-for-the-wild-theory-that-says-we-could-all-be-space-aliens/?sh=69581af96543
https://kids.frontiersin.org/articles/10.3389/frym.2019.00076
https://astrobiology.nasa.gov/research/life-detection/about/
Aspecto da Terra primitiva.
Abiogênese: acredita-se que a matéria não viva possa se organizar de maneira a gerar os organismos vivos.
- Abiogênese por meio de processos de “evolução química”’, de longa duração, nos quais houve a formação das substâncias constituintes das células, sua organização e a geração das primeiras células. É o conceito moderno e o mais aceito pelos pesquisadores.


Esquema simplificado do experimento de Redi.

Frasco com o gargalo curvado usado no experimento de Pasteur.

Resumo simplificado de como a vida pode ter surgido.

Modelo do aparelho de Miller.

A hipótese da panspermia prevê que algumas substâncias e talvez até micro-organismos possam ter sido trazidos para a Terra em corpos celestes.

Como as moléculas de RNA podem tanto transmitir informações genéticas quanto ter atividade catalítica, podem ter sido as precursoras tanto do DNA quanto das proteínas.

Candidatus Pelagibacter communis. São as células de vida livre com o menor genoma conhecido, de 1.308.759 pares de bases e aproximadamente 1389 genes.
Fermentadores (liberam CO2) => Fotossíntéticos (liberam O2) => Aeróbicos.

Resumo de um ecossistema encontrado nas vizinhanças das fontes hidrotermais.

Esquema mostrando como poderiam ter surgido e se desenvolvido as células eucariontes.
https://pubmed.ncbi.nlm.nih.gov/15209075
https://www.forbes.com/sites/jamiecartereurope/2020/08/26/what-is-panspermia-new-evidence-for-the-wild-theory-that-says-we-could-all-be-space-aliens/?sh=69581af96543
https://kids.frontiersin.org/articles/10.3389/frym.2019.00076
https://astrobiology.nasa.gov/research/life-detection/about/


