Translate

sábado, maio 26, 2012

FOTOSSÍNTESE SIMPLIFICADA E RESUMIDA


FOTOSSÍNTESE SIMPLIFICADA E RESUMIDA
Maximiliano Mendes

Podemos classificar os organismos em dois grupos, quanto à forma como obtêm alimentos:

Heterótrofos: não são capazes de produzir as substâncias orgânicas que lhes servem de alimento a partir de compostos inorgânicos simples. Logo, têm de ingeri-las. É o caso, por exemplo, dos animais. Lembre-se de que as substâncias orgânicas são aquelas constituídas primordialmente de CHONSP: carbono, hidrogênio, oxigênio, nitrogênio, enxofre e fósforo. (*O CO2 não é considerado uma substância orgânica).
Autótrofos: são capazes de produzir as substâncias orgânicas que lhes servem de alimento. Bons exemplos de organismos autótrofos são as plantas, as algas verdes e as cianobactérias, todos fotossintetizantes. Há também os procariontes quimiossintetizantes.


Podemos considerar que todos os ecossistemas necessitam da presença de organismos autótrofos, que atuarão como os produtores (1º nível trófico). No caso, produtores de substâncias orgânicas para eles e para quem os consome, os consumidores (2º, 3º... níveis tróficos), heterótrofos.


A fotossíntese é um mecanismo de síntese de substâncias orgânicas a partir de CO2 e energia luminosa. De certa forma, podemos imaginar a fotossíntese como um processo que se dá no sentido contrário ao da respiração celular, como se pode ver nas equações simplificadas abaixo:

Respiração celular: Glicose (“alimento”) + 6 O2 --> 6 CO2 + 6 H2O + Energia potencial química.
Fotossíntese: 6 CO2 + 6 H2O + Energia luminosa --> Glicose (“alimento”) + 6 O2.

Veja que os produtos de um processo podem ser considerados como os reagentes do outro.

Fases da fotossíntese: são duas e ambas ocorrem nos cloroplastos.


Fase "clara" ou etapa fotoquímica:

Essa etapa ocorre nas membranas tilacoides e pode ser chamada de fase "clara" por depender diretamente da energia luminosa, ou seja: só ocorre na presença de luz. O processo utiliza pigmentos, moléculas capazes de absorver a luz visível. Na fotossíntese, os principais tipos de pigmentos envolvidos são as clorofilas, localizadas em dois tipos de complexos proteicos, os chamados fotossistemas II e I (PS II e PS I).

Inicialmente, as moléculas de clorofila dos fotossistemas II absorverão a energia luminosa e isso fará com que os seus elétrons sejam excitados. Elétrons excitados se tornam instáveis e serão transferidos com alta energia para bombas de íons H+, também localizadas nas membranas tilacoides.

A luz pode se comportar como radiação eletromagnética, propaga-se por ondas eletromagnéticas, e também como partículas chamadas fótons de luz, pequenos pacotes de energia. Imagine que os fótons sejam como bolas de sinuca muito pequenas e os elétrons também. Em um jogo de sinuca, quando uma bola em movimento atinge uma bola parada, transfere energia para ela e faz com que ela se mova. No nível subatômico, quando os fótons de luz atingem os elétrons das clorofilas, transferem energia para eles, o que os excita e permite que sejam enviados com alta energia, como bolinhas de sinuca, para outras moléculas que os captam, como exemplos, veremos coenzimas captadoras de elétrons de alta energia, bombas de íons H+ e outras máquinas proteicas.

Os elétrons de alta energia transferem sua energia para as bombas de H+, de forma bastante similar ao que ocorre na cadeia de transporte de elétrons mitocondrial. A atividade das bombas de íons H+ gera uma diferença nas concentrações de íons H+ entre o estroma do cloroplasto e o interior dos tilacoides:


Os elétrons perdidos pelas clorofilas dos fotossistemas II serão repostos pela H2O, em um processo chamado de fotólise da água (veja a figura):

H2O --> 2 H+ + ½ O2 + 2 e-

Atenção para o fato de que o O2 gerado pela fotossíntese é proveniente da H2O e não do CO2!
Como se pode ver na figura acima, da cadeia de transporte de elétrons da etapa fotoquímica, a luz incide sobre as clorofilas de ambos os fotossistemas e em ambos os casos ocorre a liberação de elétrons de alta energia.

Os elétrons que transferiram energia para as bombas de H+ serão transferidos para as moléculas de clorofila dos fotossistemas I a fim de repor os elétrons que elas estão perdendo sendo enviados para a próxima fase da fotossíntese.

Enfim, é uma cadeia de transporte de elétrons na qual se pode imaginar que inicialmente os elétrons partem da água.

Vimos que ocorre o bombeamento de íons H+ e que isso gera uma diferença de concentração entre o interior dos tilacoides (concentração maior) e o estroma do cloroplasto (concentração menor). Assim, os íons H+ tendem a atravessar as membranas tilacóides pela ATP sintase, basicamente a mesma da respiração celular: uma permease com uma turbina acoplada que pode girar e fosforilar ADP para formar ATP, graças à energia fornecida pela passagem dos íons H+ através dela:


A quantidade de ATPs gerados depende da intensidade luminosa, disponibilidade de água, temperatura e outros fatores, por isso não é necessário decorar as quantidades geradas.

É importante perceber que a fase clara da fotossíntese é similar ao que ocorre na cadeia de transporte de elétrons e fosforilação oxidativa mitocondriais (aqui, chamada fotofosforilação), só que ao invés de serem as etapas finais, na fotossíntese, essas são as etapas iniciais. Note também que na fotossíntese se gera O2 (a partir da quebra água) e na respiração se consome O2.

A etapa fotoquímica produz ATP e elétrons de alta energia para a próxima fase (fase "escura" ou de fixação do carbono).

Esses elétrons de alta energia em trânsito participam de reações de oxidação-redução e são transferidos de uma espécie química para outra. Então não vagam livres pelas soluções celulares, eles são captados por substâncias aceptoras de elétrons, que, ao captá-los são reduzidas e ao transferi-los, são oxidadas. Ao término da fase fotoquímica, os elétrons de alta energia a serem utilizados na próxima fase da fotossíntese são captados e transportados por uma coenzima chamada dinucleotídeo de adenina e nicotinamida fosfato (NADP+) conforme a reação abaixo:

NADP+ + H+ + 2 e- --> NADPH

O NADP+ é a forma oxidada e o NADPH é a forma reduzida (captou os elétrons). O NADPH, posteriormente sofre oxidação e transfere os elétrons de alta energia previamente captados. Veja também que o NADP+ também capta H+, para balancear as cargas negativas dos elétrons.

A imagem abaixo apresenta a mesma cadeia de transporte de elétrons da fotossíntese, porém, de forma mais detalhada, mostrando várias das substâncias que atuam nas reações de oxidação-redução:


Fase "escura" ou de fixação do carbono:

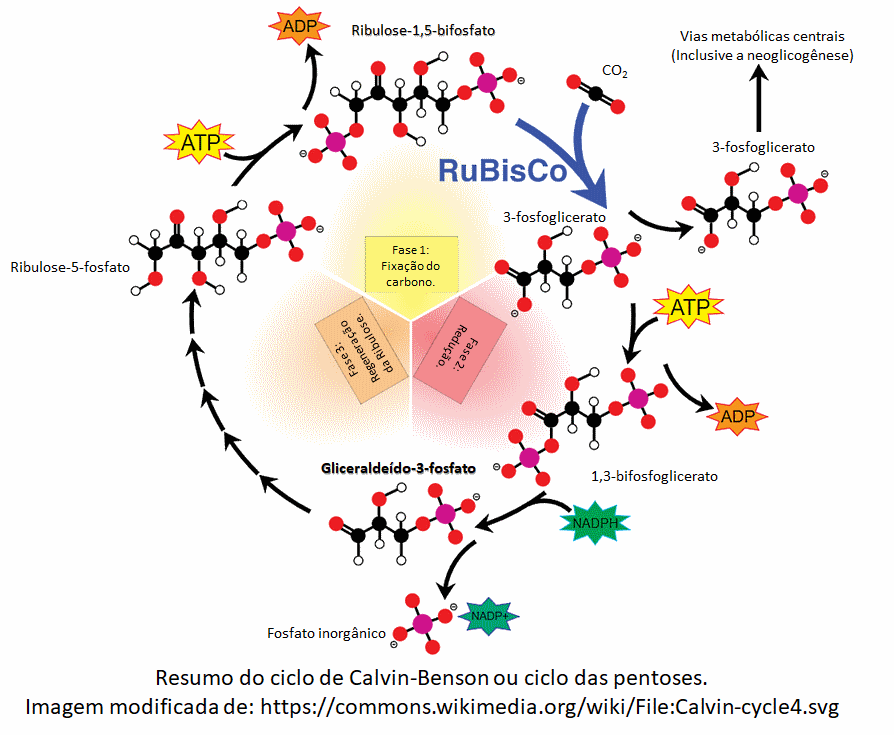
Também chamada de fase puramente química. Consiste em um ciclo de reações, o ciclo de Calvin-Benson (ou ciclo das pentoses), que ocorre no estroma dos cloroplastos e não depende diretamente da luz, mas depende diretamente dos produtos da fase clara: ATP e os elétrons de alta energia transportados pelo NADPH que os havia captado. Logo, por não depender diretamente da luz, o ciclo de Calvin pode ocorrer na presença e na ausência de luz (de dia e de noite). Lembrando que, na ausência de luz, o ciclo persiste enquanto durarem os produtos da fase clara, então, as plantas que não recebem iluminação adequada podem morrer.

Basicamente, o ciclo de Calvin utiliza moléculas de CO2 para a geração de uma determinada substância orgânica, com o uso de ATPs e elétrons de alta energia (equação simplificada):

6 CO2 + 18 ATP + elétrons de alta energia --> 2 gliceraldeído-3-fosfato (C3H7O6P).

Uma forma de escrever a equação simplificada com os NADPH pode ser:

3 CO2 + 9 ATP + 6 NADPH -> C3H6O3-fosfato  + 9 ADP + 8 Pi + 6 NADP+

As moléculas de gliceradeído-3-fosfato ou fosfogliceraldeído, abreviadas como PGAL ou G3P, podem ser utilizadas pelas células para gerar outras substâncias que lhes servem de alimento e também para os organismos que as consomem, como os herbívoros. Como exemplo, um processo chamado neoglicogênese utiliza dois PGAL para gerar uma molécula de glicose. 

O processo tem o nome de ciclo, pois um dos reagentes iniciais é também um dos produtos finais, no caso, uma molécula chamada de ribulose-1,5-bifosfato. A imagem abaixo resume o processo:


Veja também:

REFERÊNCIAS

Amabis & Martho. Biologia das Células. Moderna. 2010.
Campbell, Reece et al. Biologia. 8ª Ed. Artmed.
Catani et al. Ser Protagonista – Biologia – Vol. 1. Edições SM. 2009.
Polkinghorne, J. Quantum Physics and Theology – An Unexpected Kinship. Yale University Press. 2007.

Na internet:


http://www.bio.purdue.edu/people/faculty/cramer/cramerlab/cytbf.html

https://www.youtube.com/watch?v=eo5XndJaz-Y

https://www.youtube.com/watch?v=0UzMaoaXKaM

(Esses dois últimos vídeos, TED-Ed, têm legendas em língua portuguesa disponível).

quinta-feira, maio 24, 2012

FERMENTAÇÃO

FERMENTAÇÃO 

Maximiliano Mendes

A fermentação é um processo de geração de energia no qual ocorre a oxidação incompleta da glicose, em contraposição à oxidação completa que ocorre na respiração celular. Logo, na fermentação, nem todas as ligações covalentes entre os átomos de carbono serão rompidas, haverá menos elétrons de alta energia sendo liberados e, assim, esse processo libera menos energia que a respiração celular (energia potencial química que será armazenada nas ligações entre os grupos fosfato do ATP).

Quando ocorre?

Normalmente o processo ocorre associado às condições anaeróbias (ausência de O2). Como exemplo: as nossas células musculares, caso não recebam O2, podem gerar energia via fermentação láctica. Algumas amebas que vivem em ambientes anaeróbicos ou com baixas concentrações de oxigênio não apresentam mitocôndrias. Como exemplos temos a Pelomyxa palustres e a Entamoeba histolytica (a causadora da disenteria amebiana).

Podemos, nesse âmbito, classificar os organismos em dois tipos:

Anaeróbios facultativos: podem viver na presença ou na ausência de O2. Ex: a bactéria Escherichia coli e a levedura Saccharomyces cerevisiae. Se houver O2 disponível no meio a produção de energia se dá via respiração, caso não, a produção ocorre por fermentação. Podemos considerar que as nossas células musculares se comportam de maneira similar aos organismos anaeróbios facultativos.

Anaeróbios obrigatórios: só conseguem viver na ausência de O2, pois o O2 é tóxico para esses organismos. Ex: Clostridium tetani, a bactéria causadora do tétano. Lembrar que o oxigênio molecular pode gerar espécies reativas de oxigênio, que por sua vez podem causar danos ao DNA. 

A respiração celular, ao contrário, é um processo aeróbio, só acontece na presença de O2.


OBS: quando nos referimos à respiração celular, normalmente estamos falando da respiração aeróbica, a qual tem o O2 como aceptor final de elétrons da cadeia de transporte de elétrons. Porém, alguns organismos são capazes de efetuar um processo de respiração anaeróbica! Nesses casos, a diferença é que se utiliza outro aceptor final para a cadeia de transporte de elétrons. Por exemplo, sulfobactérias marinhas, redutoras de sulfato, que vivem em ambientes anaeróbicos, utilizam o SO4-2 como aceptor final de elétrons da cadeia de transporte de elétrons.


No que consiste?

Em resumo, se não há oxigênio, ou mitocôndrias, ou a maquinaria celular necessária para realizar a respiração, o organismo ou a célula poderá produzir ATP via glicólise. Porém, na glicólise são produzidas apenas duas moléculas de ATP para cada molécula de glicose e isso pode não ser o bastante para manter um organismo funcionando.

Tanto a glicólise quanto os outros processos do metabolismo energético consistem em uma série de reações de oxidação-redução. Nessas reações, umas substâncias perdem elétrons e hidrogênios, as que são oxidadas, e outras ganham, as que são reduzidas. “Oxidar é dar elétrons e reduzir é adquirir”.

De forma geral, a quebra das ligações covalentes entre os átomos de carbono libera elétrons de alta energia (oxidação) que são captados por certas coenzimas. No caso da glicólise, a coenzima de interesse é o dinucleotídeo de nicotinamida e adenina NAD+, que capta elétrons de alta energia provenientes das reações redox que ocorrem durante a glicólise:


Na cadeia de transporte de elétrons da respiração, o aceptor final de elétrons é o O2 e esse processo ocorre após a oxidação completa da glicose. Já na fermentação, o aceptor final de elétrons são moléculas orgânicas: o próprio piruvato, na fermentação láctica e o acetaldeído, na fermentação alcoólica. As reações que ocorrem após a glicólise convertem os piruvatos nessas outras substâncias utilizando os NADH gerados na glicólise e regenerando NAD+ rapidamente para que possam participar das reações de oxidação-redução da glicólise. Já no caso da respiração, a regeneração de NAD+ só ocorre após a transferência de elétrons de alta energia do NADH para as bombas proteicas de H+ da cadeia de transporte de elétrons. Por isso é que o consumo de glicose pode aumentar na fermentação: O NAD+ é regenerado mais rapidamente de forma a promover a manutenção do processo e a geração de energia.

Veja as figuras:


Fermentação alcoólica:


Fermentação láctica:


Como os piruvatos não geram acetil-CoA e não ocorre ciclo de Krebs, não há oxidação completa, ou seja, nem todas as ligações covalentes entre os átomos de carbono da glicose são quebradas, e, por isso, a geração de energia, ou de ATP, é menor: dois na fermentação vs. 30 na respiração aeróbia.


Exemplos de fermentação:


Veremos aqui apenas os dois tipos básicos já mencionados, a láctica e a alcoólica. 


Na fermentação alcoólica, são gerados etanol (um álcool) e CO2 a partir de cada molécula de ácido pirúvico. O etanol tem apenas dois átomos de carbono, um terceiro, do piruvato, é perdido como CO2. Associaremos esse processo às leveduras (Reino Fungi), porém, há  bactérias também capazes de realizá-lo. Como exemplos de aplicações nas quais esse processo está envolvido temos:

Produção de bebidas alcoólicas, tendo em vista que o processo gera etanol. As diferentes bebidas alcoólicas são geradas a partir da atividade das leveduras Saccharomyces cerevisiae, que se utilizam da glicose presente em certos alimentos para gerar energia via fermentação. Daí são geradas as diversas bebidas alcoólicas, como o vinho (fermentação do suco de uva), cerveja (do malte, oriundo da cevada), saquê (arroz) e etc.

Produção do álcool combustível, no qual as leveduras atuarão sobre o melaço da cana de açúcar.

Fabricação de pães, bolos, biscoitos e outras massas. Inicialmente se mistura fermento biológico em pó (leveduras) à massa. No interior da massa, um meio anaeróbico, as leveduras realizam fermentação alcoólica e liberam CO2, que forma bolhas capazes de inflar a massa. E o álcool? O álcool não é liberado em grandes quantidades: os períodos de fermentação empregados na produção de bebidas alcoólicas são muito mais longos que a fermentação das massas (meses vs. minutos). Ademais, o álcool pode evaporar ou ser degradado quando a massa vai para o forno assar. Por isso é que ninguém fica embriagado comendo pães.


Na fermentação láctica, os piruvatos (ou ácidos pirúvicos) são convertidos em ácido láctico, moléculas que também têm três átomos de carbono. Associaremos esse processo às bactérias (como os lactobacilos) e aos animais. Como exemplos de aplicações:


Produção de laticínios. Vamos exemplificar com a produção de iogurtes naturais (coalhadas): bactérias, dentre as quais os lactobacilos que vivem no leite ou são inoculados a ele, realizam fermentação láctica e liberam o ácido láctico para o meio. Isso torna a solução mais ácida (diminui o pH), o que causa a desnaturação de proteínas como a caseína do leite. As proteínas desnaturadas se entrelaçam formando uma massa coagulada: a coalhada. Esses leites fermentados do tipo Yakult e Chamyto contêm lactobacilos capazes de tornar o meio intestinal menos alcalino, devido à liberação do ácido láctico, e isso dificulta a multiplicação de micro-organismos potencialmente danosos.


Outros aspectos relacionados à fermentação láctica (ou não...):

Dores musculares após esforços intensos: em atividades físicas muito intensas a frequência cardíaca aumenta a fim de transportar O2 mais rápido para as células musculares (e eliminar CO2). Porém, o coração não consegue se contrair numa frequência rápida o suficiente para levar O2 em quantidade suficiente para todas as células musculares. Assim, aquelas que não recebem têm de gerar energia via fermentação láctica e esse processo pode ser mantido por aproximadamente três minutos. Durante esse tipo de atividade se tem uma sensação de queimação nos músculos, que pode doer, mas não persiste. A dor que incomoda normalmente vem no dia seguinte.

Até pouco tempo atrás se acreditava que as dores musculares mais fortes eram devidas ao acúmulo de ácido láctico, por causar acidose, porém, hoje já se sabe que, na verdade as dores são acarretadas por microlesões nas fibras musculares e substâncias inflamatórias.

“Dor de viado”, ou melhor – dor abdominal passageira relacionada ao exercício (exercise related transient abdominal pain): muitas vezes associada ao acúmulo de ácido láctico no fígado. Se você buscar informações sobre essa dor aqui na internet verá muitas explicações distintas, porém, a melhor parece ser a de que essa dor, mais comum em atividades que envolvem movimentos repetitivos do tronco e que pode ser acentuada pelo período pós prandial (período após as refeições) seja causada por irritação do peritônio parietal. Esse peritônio parietal é uma membrana serosa que reveste a cavidade abdominal (celoma). Membranas serosas são constituídas de um tecido epitelial pavimentoso simples acima de um tecido conjuntivo fino. Talvez haja aumento de pressão no peritônio causado pela fricção resultante dos movimentos do tórax.


O ácido lático resultante da fermentação nas nossas células musculares tem dois destinos principais: ou ele pode ser usado na neoglicogênese, em células do fígado, para gerar glicose, em uma via chamada de ciclo de Cori, ou então, ele pode ser reoxidado a piruvato em células que tenham O2 disponível. Esses piruvatos podem então ser usados para gerar Acetil-Coenzima A.


Por último é bom destacar que, nessas situações de breves explosões musculares, além da fermentação láctica, também há geração de ATP a partir da transferência de grupos fosfato da creatina fosfato para o ADP:

ADP + Creatina-Fosfato <- -> ATP + Creatina


A reação é reversível e catalisada pela enzima creatina cinase. No início de uma atividade intensa as células musculares utilizam o estoque de ATP disponível, seguindo a atividade, de 10 s até aproximadamente 30 s, as células geram ATP primordialmente pela fosforilação via creatina-fosfato. Daí, até três minutos, a maior parte da energia é gerada via fermentação láctica. Lembre-se: estamos falando de uma atividade física intensa, os movimentos musculares são rápidos e fortes.


Veja também:


Alberts et al. Molecular Biology of the Cell. 5th ed. Garland. 2008.
Amabis & Martho. Biologia das Células. Moderna. 2010.
Campbell, Reece et al. Biologia. 8ª Ed. Artmed. 2010.
Catani et al. Ser Protagonista – Biologia – Vol. 1. Edições SM. 2009.
Feltre. Fundamentos da Química – Volume Único. Moderna. 2001.
Junqueira & Carneiro. Histologia Básica. 10ª Ed. Guanabara-Koogan. 2004.
Morton, DP. Exercise Related Transient Abdominal Pain. Br J Sports Med. 37. pp: 287-288.
Robergs, R. Guiasvand, F. & Parker, D. Biochemistry of Exercise-Induced Metabolic Acidosis. Am J Physiol Regul Integr Comp Physiol. v. 287. pp:502-516. 2004.

Na internet:


quinta-feira, maio 03, 2012

Respiração Celular Simplificada

RESPIRAÇÃO CELULAR – Resumo
Maximiliano Mendes


Antes de mais nada, vejamos a equação simplificada do processo de respiração celular:


Se compararmos a equação simples da respiração com a da fotossíntese, um processo é quase o contrário do outro, os produtos de um são os reagentes do outro.

Para sobreviver as células precisam de energia. Energia pode ser definida como a capacidade de gerar mudança, realizar trabalho ou rearranjar uma porção de matéria. Já o trabalho pode ser a movimentação de matéria contra forças opositoras (atrito, gravidade e etc.).


A respiração celular é o principal processo responsável pela geração de energia nas células. Basicamente, consiste em uma série de reações de oxidação-redução que resultarão na quebra de ligações covalentes entre os átomos de carbono de moléculas orgânicas, como a glicose, com a consequente liberação de elétrons de alta energia.


Essa energia será transferida e armazenada nas ligações covalentes entre os grupos fosfato do ATP, o trifosfato de adenosina:


O ATP é um nucleotídeo que funciona como uma “moeda energética” na célula, custeando os gastos energéticos para que os processos endergônicos ocorram. Isso porque essa molécula armazena energia potencial química graças à sua estrutura, que é a forma como os seus átomos estão arranjados e ligados. Os grupos fosfato têm cargas negativas, então se repelem e esse é um dos motivos pelos quais o ATP tem um alto potencial de transferência de grupos fosfato.


Ao transferir grupos fosfatos para proteínas, por exemplo, o ATP transfere energia para que elas executem certas funções. Podemos resumir a reação da seguinte forma:


(Onde o ADP é o difosfato de adenosina e o Pi é chamado de fosfato inorgânico, dissociado do ATP). 

ETAPAS DA RESPIRAÇÃO CELULAR:

Observação: estudaremos o processo tendo como base a quebra da molécula de glicose, um monossacarídeo de seis átomos de carbono (C6H12O6).

Glicólise: essa etapa ocorre no citosol e não requer oxigênio (é anaeróbia).

Consiste na quebra da glicose, uma molécula de seis átomos de carbono em duas moléculas de piruvato (ou ácido pirúvico), moléculas com três átomos de carbono. Essa quebra se dá em várias etapas, não mostradas aqui e gera, por molécula de glicose, dois ATPs. Veja a equação simplificada:


O "e-" dentro da explosão representa a energia liberada, ou melhor: elétrons de alta energia, que são liberados pelas reações de quebra. A equação não está balanceada e mostra apenas os principais reagentes e produtos. Todas as outras equações serão mostradas dessa forma.

Formação de acetil-Coenzima A e Ciclo do ácido cítrico (ou ciclo de Krebs): ocorre na matriz mitocondrial, pois os piruvatos gerados na glicólise adentram as mitocôndrias. Ainda não requer oxigênio.

Inicialmente ocorre a formação de acetil-Coenzima A (ou acetil-CoA):


Como cada glicose gera duas moléculas de piruvato, para cada molécula de glicose, nessa etapa, são liberados dois CO2, restando quatro átomos de carbono da molécula inicial.

Em seguida, acetil-CoA entra na série de reações do ciclo de Krebs:


Esse também é um processo que se dá em várias etapas e tem o nome de ciclo, pois o oxaloacetato, molécula de quatro átomos de carbono, é um reagente inicial da série de reações e volta a ser produzido na reação final da sequência. Essas moléculas de oxaloacetato produzidas, podem então reagir com outras moléculas de acetil-CoA, participando de novos ciclos.

Note que nessa etapa não foi produzido o ATP, mas sim o GTP, guanosina trifosfato. Mas o GTP pode ser convertido em ATP, e, assim como o ATP, atua transferindo fosfatos em processos que necessitam de energia para acontecer. Lembrar que, para cada molécula de glicose são produzidos dois ATPs nessa etapa.

Durante a formação de acetil-Coa e o ciclo de Krebs, vimos que todos os seis átomos de carbono da glicose foram eliminados na forma de CO2. Para isso, foram quebradas as ligações covalentes que uniam esses átomos, resultando na liberação de elétrons de alta energia:


Por enquanto, só foram produzidas quatro moléculas de ATP para a molécula de glicose. Suas células e o seu organismo precisam de mais.

Cadeia de transporte de elétrons e fosforilação oxidativa: são as etapas finais. Ocorrem nas invaginações das membranas internas das mitocôndrias, as cristas mitocondriais, e necessitam de O2.


Primeiramente, na cadeia de transporte de elétrons, os elétrons de alta energia provenientes da quebra das ligações covalentes entre os carbonos da glicose transferem (indiretamente) a energia deles para proteínas transportadoras de íons H+ nas cristas:  


Modelo da proteína transportadora (citocromo C oxidase): http://www.rcsb.org

Essas proteínas são bombas, ou seja, proteínas que realizam transporte ativo, aquele em que há a necessidade de energia, tendo em vista que o transporte se dá contra o gradiente de concentração: a substância ou íon passa do meio onde está presente em menor concentração para onde está presente em maior concentração (“a proteína empurra/bombeia mais, onde já têm muitos”). Assim, a concentração de íons H+ no espaço intermembranar passa a ser maior do que na matriz. Ao final dessa etapa o O2 atuará como aceptor final de elétrons, captando os elétrons e H+ para formar água:


Note que os elétrons captados eram os de alta energia, que por terem transferido sua energia para as bombas de íons H+ efetuarem o transporte ativo, agora têm baixa energia (observe a figura de novo).


Por fim, temos a fosforilação oxidativa, processo no qual moléculas de ADP serão fosforiladas para gerar ATP, graças à energia proveniente de reações de oxidação-redução (nas quais houve a quebra das ligações covalentes e a liberação de elétrons de alta energia).


Nessa parte final do processo, os íons H+ passarão do espaço intermembranar para a matriz mitocondrial via transporte passivo, através de uma permease possuidora de uma turbina molecular a ATP sintase. Essa turbina molecular é movida pela passagem dos íons H+ e o movimento gera a energia necessária para que ela atue como enzima e catalise a fosforilação das moléculas de ADP em ATP:  


Modelo da ATP sintase: http://www.rcsb.org

Vamos adotar a estimativa de que, na prática, devido às reações cruzadas e outros fatores, a quantidade de moléculas de ATP geradas por moléculas de glicose na fosforilação oxidativa é de aproximadamente 26.

RENDIMENTOS DO PROCESSO DE RESPIRAÇÃO

Por molécula de glicose, na prática, a quantidade de ATPs gerados é de aproximadamente:

2 da glicólise + 2 do ciclo de Krebs + 26 da fosforilação oxidativa = 30 ATPs.

Por fim, deve-se destacar que os elétrons de alta energia que participam das reações de oxidação-redução mostradas não se deslocam sozinhos ou ficam “nadando” sozinhos nas soluções celulares. Como se trata de reações redox, sempre que há uma espécie química sofrendo oxidação, há outra, sofrendo redução, captando os elétrons doados.

No processo de respiração, destacam-se duas coenzimas aceptoras/captadoras de elétrons de alta energia liberados durante a oxidação completa da glicose:

Dinucleotídeo de nicotinamida e adenina, NAD+/NADH. NAD+ é a forma oxidada e NADH é a forma reduzida. NAD+ + H+ + 2 e- --> NADH.
Dinucleotídeo de flavina e adenina, FAD/FADH2. O FAD é a forma oxidada e o FADH2 é a forma reduzida. FAD + 2 H+ + 2 e- --> FADH2.

Após captarem os elétrons de alta energia essas substâncias os transferem para as bombas de H+ localizadas nas membranas internas das mitocôndrias.

Em termos das quantidades geradas em cada processo, para cada molécula de glicose: na glicólise são gerados dois NADH, na formação de acetil-CoA são gerados mais dois NADH e no ciclo de Krebs são gerados seis NADH e dois FADH2.

A imagem abaixo apresenta a cadeia de transporte de elétrons e a fosforilação oxidativa em maiores detalhes:


Veja também:


REFERÊNCIAS

ALBERTS, B. et al. Molecular Biology of the Cell. 4th ed. Garland. 2002.
AMABIS & MARTHO. Biologia das Células. Moderna. 2004.
BERG, JM. et al. Biochemistry. 8th ed. WH Freeman & Company. 2015. (É o Stryer).
CAMPBELL, N. et al. Biologia. 8ª ed. Artmed. 2010.
LEHNINGER, et al. Principles of Biochemistry. 4th ed. WH Freeman. 2004.

LODISH, H. et al. Molecular Cell Biology. 5th ed. WH Freeman. 2003.

segunda-feira, abril 30, 2012

Resumo sobre as organelas e estruturas celulares

AS ORGANELAS E AS ESTRUTURAS CELULARES 

Maximiliano Mendes 


As células apresentam três componentes fundamentais:

  • Membrana plasmática: película que delimita o conteúdo celular e controla o trânsito de substâncias que entram e saem da célula.
  • Material genético: moléculas de DNA, onde estão inscritas as informações biológicas/genéticas. 
  • Citoplasma: porção gelatinosa onde ocorre a maioria das reações metabólicas.

Existem dois tipos celulares básicos, as células eucariontes e as procariontes:

Células procarióticas: são as células das bactérias e arqueas. Em termos de complexidade, são as mais simples. Não possuem envelope nuclear e, normalmente, também não possuem organelas membranosas no citoplasma. Vamos admitir que as entidades mais complexas são aquelas possuidoras de mais componentes e, assim, um número maior de interações entre esses componentes.


OBS: dependendo da imagem, pode ser mostrada nas células bacterianas uma estrutura chamada de mesossomo. Esse mesossomo não é uma organela ou uma estrutura funcional real, na verdade, ele é uma invaginação da membrana plasmática que surge como artefato produzido por certas técnicas de preparação de amostras para observação ao microscópio.

Células eucarióticas: mais complexas, possuidoras de envelope nuclear e várias outras organelas membranosas.


Envelope nuclear: também chamado carioteca. Consiste de uma membrana dupla, contendo poros e contínua com o retículo endoplasmático. Em outras palavras, um mesmo sistema membranoso forma a carioteca e o retículo endoplasmático.


Dentro do envelope nuclear se encontram, dentre outros componentes:
  • Nucléolo: estrutura contendo diversas macromoléculas, dentre as quais, componentes dos ribossomos e outras, que auxiliam na montagem deles. Em outras palavras, é o sítio onde os ribossomos maturam.
  • Cromatina: moléculas de DNA associadas a diversas proteínas. A cromatina é o conjunto dos cromossomos.

Nessas células, o citoplasma é a porção localizada entre o envelope nuclear e a membrana plasmática. É constituído de:
  • Organelas membranosas e não membranosas. No segundo caso, podemos dizer que as organelas não membranosas são estruturas citoplasmáticas como os ribossomos, os centrossomos e o citoesqueleto.
  • Citosol: solução contendo diversos solutos, como moléculas orgânicas, compostos iônicos e etc. As organelas estão imersas no citosol.

ORGANELAS E ESTRUTURAS CITOPLASMÁTICAS


Antes de listarmos as principais organelas e as suas funções principais é bom notar que, se imaginarmos as células como megafábricas, inferimos que essas megafábricas têm diversas máquinas e setores, como as linhas de produção de diversos produtos, controle de qualidade, reciclagem, eliminação dos dejetos e assim por diante. Na megafábrica celular, esses setores, com suas máquinas (as proteínas), podem ser representados pelas organelas. Vejamos então um resumo sobre elas

Ribossomos:

  • Organelas não membranosas responsáveis pela síntese de proteínas.
  • Presentes dispersos no citoplasma, aderidos à superfície de outra organela, o retículo endoplasmático granular e, ainda, no interior das mitocôndrias e dos cloroplastos.
  • Possuem duas subunidades, uma maior e uma menor, ambas constituídos por rRNA e proteínas.
  • Presentes nas células eucariontes e procariontes.


Retículo endoplasmático: rede de túbulos, bolsas e cisternas membranosas que se estende pelo interior da célula. Cisternas são vesículas ou bolsas membranosas de formato achatado.

Retículo endoplasmático granular – REG:

  • Apresentam ribossomos aderidos em sua superfície (os grânulos).
  • Envolvidos na síntese, transporte e modificação química de proteínas cujos principais destinos finais são os lisossomos, a membrana plasmática e a secreção celular. Essas proteínas começam a ser sintetizadas no citosol, porém, possuem uma sequência sinal de aminoácidos que faz com que a sua síntese continue após a adesão dos ribossomos ao REG.

Retículo endoplasmático liso – REL:

  • Não apresentam ribossomos.
  • Envolvidos na síntese de ácidos graxos, fosfolipídios e esteroides.
  • Possuem enzimas capazes de modificar e inativar substâncias tóxicas, drogas e álcool.
  • Nas células musculares essas organelas são chamadas de retículo sarcoplasmático e armazenam Ca+2 para a contração muscular.

Complexo de Golgi: conjunto de 6-20 cisternas empilhadas localizado próximo ao REG.

  • Modificação química e direcionamento de proteínas provenientes do REG aos seus destinos adequados (lisossomos, membranas e secreção).
  • Responsáveis pelo processo de secreção celular e renovação da membrana plasmática, visto que, do complexo de Golgi brotam vesículas contendo as proteínas a serem transportadas e essas vesículas podem se fundir à membrana plasmática, levando à ela, novos lipídios (que foram sintetizados no REL).
  • Produzem os lisossomos, os acrossomos dos espermatozóides e os vacúolos das células vegetais.
  • Também estão envolvidos na síntese de certos glicídios. Exemplos: a hemicelulose, presente nas paredes celulares das células vegetais e alguns glicídios que serão ligados em glicoproteínas.


Lisossomos: vesículas cujo interior têm enzimas digestórias e é mantido ácido (pH ~ 4,8) por bombas de H+ e Cl-, responsáveis pelo processo de digestão intracelular (lembre-se de que as bombas são proteínas que realizam transporte ativo). São originados a partir do complexo de Golgi.

  • Heterofagia: digestão de material capturado do meio externo via endocitose (fagocitose ou pinocitose).
  • Autofagia: digestão de estruturas celulares degradadas ou em situações de carência nutricional, com o intuito de reutilizar/reaproveitar seus componentes. Nas células vegetais esse processo ocorre no vacúolo central.

Os processos de digestão intracelular podem ser sucedidos pela clasmocitose ou defecação celular, que por sua vez se dá por exocitose.

  • Lisossomo primário: vesícula que brota do complexo de Golgi. Contém as enzimas digestórias, mas não está digerindo nada.
  • Lisossomo secundário: está digerindo algo. Resulta da fusão entre os lisossomos primários e  os vacúolos (= vesículas) contendo algo a ser digerido.


Peroxissomos: vesículas contendo diversas enzimas envolvidas em processos oxidativos.

  • Oxidação de ácidos graxos. Ocorre a oxidação (aqui é quase sinônimo de quebra) de moléculas de ácidos graxos com a geração de uma substância chamada acetil-coenzima A. Esse processo também ocorre nas mitocôndrias. Porém, ao contrário do que ocorre nas mitocôndrias, nos peroxissomos esse processo não gera energia (no caso, energia armazenada nas moléculas de trifosfato de adenosina) e as moléculas de acetil-coenzima A geradas são exportadas e utilizadas na síntese do colesterol.
  • Inativação de substâncias tóxicas (inclusive o álcool). Lembre-se de que o REL também executa essa função.
  • Essas reações envolvem a geração de espécies reativas de O2 (ROS - reactive oxygen species, também chamadas de radicais livres de oxigênio). Essas são espécies químicas altamente reativas contendo oxigênio, por exemplo, o íon superóxido, o •O−
    2 
    do qual várias outras ROS derivam. O elétron a mais torna essas espécies altamente reativas e capazes de causar danos às células. Para eliminá-las, os peroxissomos as utilizam para gerar H2O2, que depois é degradado em H2O e O2 graças a atividade da enzima catalase. As reações que ocorrem podem ser resumidas da seguinte maneira:
    • RH2 + O2 → R + H2O2 (onde R representa o restante de alguma molécula orgânica).

    • 2 H2O2 --> 2 H2O + O2   
  • Participam da formação de ácidos esteroides biliares. 
  • Acredita-se que essas organelas surjam como vesículas que brotam do retículo endoplasmático.
  • Nas sementes em germinação, há peroxissomos especializados chamados glioxissomos, onde ocorre a conversão de ácidos graxos em glicídios, importantes para o crescimento da planta. 

Citoesqueleto: consiste em uma rede extensa de filamentos e microtúbulos proteicos que se estende por toda a célula e tem as funções de definir e organizar a sua estrutura interna, atuar na adesão entre as células e as células e o meio extracelular, possibilita os movimentos celulares (como o movimento ameboide, contração e etc.) e o movimento de estruturas dentro das células como a ciclose.

  • Microtúbulos: túbulos constituídos da proteína tubulina. Têm as funções de dar suporte a célula, no sentido de determinar sua estrutura e a disposição de estruturas internas. Também estão envolvidos no processo de divisão celular (formação do fuso mitótico e citocinese centrípeta) e formação dos centríolos, cílios e flagelos. Podem fazer o papel de “trilhos”, sobre os quais as vesículas podem se deslocar. Normalmente os microtúbulos têm uma das extremidades ligada ao centrossomo, também chamado de centro organizador de microtúbulos (mais sobre ele adiante). 
  • Filamentos de actina: atuam em conjunto com filamentos de miosina, deslizando sobre eles de forma a promover a contração e a distensão da célula ou de partes dela. Envolvidos na contração de células musculares, na ciclose (geração de correntes citoplasmáticas capazes de mover estruturas no interior da célula) e no movimento amebóide (que se dá a partir de projeções citoplasmáticas chamadas pseudópodes). Também fornecem suporte estrutural às células.
  • Filamentos intermediários: possuem diâmetro intermediário entre os microtúbulos e os filamentos de actina. Dão suporte mecânico a membrana plasmática nos locais onde ela forma junções com células vizinhas ou com a matriz extracelular (desmossomos e hemidesmossomos). Também constituem a lâmina nuclear, que dá suporte a carioteca. A queratina, proteína constituinte dos pelos, unhas e células epidérmicas, faz parte dos filamentos intermediários.
Graças às fibras proteicas do citoesqueleto o citosol pode se encontrar em dois estados de densidade, o sol, menos denso, e o gel, mais denso e normalmente encontrado na periferia da célula. Os estados sol-gel podem ser interconvertidos e isso permite, por exemplo, que a célula emita prolongamentos como os pseudópodes.

Centrossomos ou centros organizadores de microtúbulos: são organelas não membranosas, constituídas de uma matriz de fibras de proteínas de onde partem microtúbulos. Dentre as suas funções, participam do processo de divisão celular, pois formam uma rede de microtúbulos que movimenta cromossomos, o chamado fuso mitótico. Geralmente há um por célula, localizado próximo do núcleo. Nas células animais, os centrossomos possuem um par de centríolos.


Centríolos: cada centríolo é uma estrutura tubular composta por nove trios de microtúbulos. As células eucariontes animais apresentam os centríolos em duplas, com os dois dispostos perpendicularmente no centrossomo.  Acredita-se que os centríolos estejam envolvidos no processo de divisão celular e na formação de cílios e flagelos. É importante notar que nem todas as células eucarióticas apresentam centríolos, destacadamente, as dos vegetais superiores (gimnospermas e angiospermas). Já se acreditou que os centríolos possuíam DNA, mas essa hipótese foi descartada. No entanto, os centríolos têm moléculas de RNA associadas, sendo que os genes que codificam essas moléculas de RNA são localizados no DNA nuclear.


Cílios: diversos prolongamentos citoplasmáticos envolvidos na locomoção, captura de alimentos ou até mesmo na remoção de partículas de sujeira das vias aéreas e deslocamento dos óvulos (na verdade, ovócitos II) ao longo das tubas uterinas. Consistem em um par central rodeado por nove pares incompletos de microtúbulos, sendo esse conjunto envolto pela membrana plasmática. Originam-se a partir de centríolos que migram para a periferia da célula.

Flagelos: semelhantes aos cílios só que mais longos e presentes em menor número. As células procariontes também apresentam flagelos, porém, de estrutura distinta, no qual o filamento é um tubo de proteínas possuindo, em sua base, um motor proteico capaz de movimentá-lo.

A figura acima mostra a estrutura dos centríolos, cílios e flagelos. Os círculos verdes na parte superior e os azuis, na parte inferior, representam microtúbulos.

Mitocôndrias:

  • São as principais responsáveis pela síntese de ATP na célula.
  • Possuem duas membranas, material genético e ribossomos próprios. Sendo esses ribossomos mais semelhantes aos ribossomos das células procariontes.
  • Podem se duplicar (com o auxílio do retículo endoplasmático).
  • Devido às características supracitadas, que tornam as mitocôndrias semelhantes aos organismos procariontes, acredita-se que essas organelas tenham origem endossimbiótica, ou seja, são, na verdade, descendentes de organismos procariontes que foram fagocitados no passado distante, mas não foram digeridos. Elas permaneceram nas células por conferirem vantagens adaptativas devido ao fato de produzirem ATP de maneira bastante eficiente. A membrana interna da mitocôndria corresponde a membrana do procarionte e a membrana externa, a de um fagossomo.


Esquema simplificado sobre a endossimbiose, que se acredita ter originado as mitocôndrias e os cloroplastos. Imagem: https://www.nature.com/scitable/topicpage/eukaryotic-cells-14023963


As organelas a seguir estão presentes apenas nas células vegetais, porém, note que isso não significa que as células vegetais sejam necessariamente mais complexas que as células animais. Ocorre que algumas estruturas das células animais normalmente não são destacadas no ensino médio. Cabe também ressaltar que as células eucariontes mais complexas são as dos protoctistas (protozoários, e algas).

Cloroplastos:

  • Plastos são organelas possuidoras de duas membranas, presentes apenas nas células vegetais, que se desenvolvem e se especializam para exercer funções específicas:
    • Leucoplastos: armazenam substâncias, como o amido, proteínas ou lipídios, dependendo do tipo de leucoplasto.
    • Cromoplastos: são os que armazenam pigmentos, como os cloroplastos, possuidores de clorofila, pigmento responsável pela captação da energia luminosa no processo de fotossíntese.
  •  Os cloroplastos estão presentes nas células das plantas e das algas. Responsáveis pelo processo fotossintético.
  • Têm várias características similares às das mitocôndrias: também possuem duas membranas, material genético e ribossomos próprios e também são capazes de se duplicar. Por isso, acredita-se que os cloroplastos também tenham origem endossimbiótica.


Vacúolos das células vegetais (muitas vezes chamados de vacúolos centrais ou apenas de vacúolos): são grandes bolsas membranosas, presentes apenas nas células vegetais, que podem ocupar até 80 % do volume da célula. As membranas dos vacúolos são chamadas  tonoplastos. 

  • Podem armazenar substâncias potencialmente tóxicas.
  • Pode-se pensar nos vacúolos como sendo lisossomos secundários especializados gigantes, pois também têm o interior mantido ácido, contêm enzimas digestórias e efetuam digestão intracelular.

Parede celular celulósica: camada externa à membrana plasmática que mantém a forma da célula e pode protegê-la contra danos, inclusive o rompimento devido à turgidez. A turgidez é o inchaço e aumento de volume por conta da entrada de água por osmose. Constituída primordialmente de celulose, mas também possui proteínas e outros polissacarídeos. 

(Outros tipos de células, como as dos fungos, algas e procariontes também podem ter paredes celulares, porém, de constituição distinta da das células vegetais).


Veja também:

http://ed.ted.com/lessons/the-operating-system-of-life-george-zaidan-and-charles-morton
http://ed.ted.com/lessons/how-we-think-complex-cells-evolved-adam-jacobson
(Têm legendas em língua portuguesa).

REFERÊNCIAS

Alberts et al. Molecular Biology of the Cell. 5th Ed. Garland Science. 2008.
Amabis & Martho. Biologia das Células. Moderna. 2004.
Campbell et al. Biology. 7th Ed. Benjamin-Cummings. 2005.
Catani et al. Ser Protagonista Biologia – Volume 1. Edições SM.
Freixo. Centrosome biogenesis and number: mechanisms of control - Determination of SAK/PLK4 interactors. Dissertação de Mestrado. Universidade de Lisboa. 2009.
Friedman et al. ER tubules mark sites of mitochondrial division. Science. 334:358-62, 2011.
Lehninger et al. Principles of Biochemistry. 4th Ed. WH Freeman. 2004.
Lodish et al. Molecular Cell Biology. 5th Ed. WH Freeman. 2003.
Lopes & Rosso. Bio: volume único. 3ª Ed. Saraiva. 2013.
Tabak et al. Peroxisomes: Minted by the ER. Current Opinion in Cell Biology. 2008, 20:393–400.

https://en.wikipedia.org/wiki/Reactive_oxygen_species
https://en.wikipedia.org/wiki/Beta_oxidation#Oxidation_in_peroxisomes
https://en.wikipedia.org/wiki/Mesosome
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC4657118/
https://en.wikipedia.org/wiki/Reactive_oxygen_species
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC2759819/
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC2835302/
http://www.nature.com/scitable/topicpage/eukaryotic-cells-14023963